南美超级胎牛血清999尝鲜特惠

二代NGS酶法转化甲基化建库所需酶类及作用
 二代NGS酶法转化甲基化建库所需酶类及作用

111
2026-11-09
DNA甲基化(5mC/5hmC)是表观遗传核心标记,广泛用于肿瘤液体活检、胚胎发育、FFPE临床样本、衰老表观时钟等研究。传统重亚硫酸盐测序(BS-seq/WGBS) 依靠强酸强碱化学转化,存在DNA大量降解、GC覆盖偏倚、微量样本建库失败率高等痛点;以EM-seq、TAPS(eTAPS)为代表的酶法转化甲基化建库,采用温和酶促反应替代剧烈化学处理,大幅保留DNA完整性,适配cfDNA、降解FFPE、微量穿刺样本等珍贵临床材料,已成为低起始量甲基化测序主流方案。
本文系统拆解EM-seq、TAPS两种商业化酶法转化技术涉及的全部核心酶、配套建库酶的功能与作用机制,横向对比BS-seq、EM-seq、TAPS三大甲基化转化技术的原理、优缺点与适用场景,并结合翌圣生物国产化酶原料与试剂盒解决方案,为科研人员、临床转化实验室提供选型与实验参考。
EM-seq(NEBNext Enzymatic Methyl-seq)是全球最早商业化的酶法甲基化转化技术,采用先建库、后酶促转化流程,整套转化依赖TET2、T4-βGT(T4-BGT)、APOBEC3A三大核心酶协同完成甲基化区分,无强酸强碱,全程温和酶促反应。
α-酮戊二酸、Fe²⁺依赖型双加氧酶,翌圣通过ZymeEditor酶改造平台优化,氧化效率≥99%,批间稳定性优异。
对DNA中5mC逐级氧化,完成甲基化修饰胞嘧啶的保护:
5-甲基胞嘧啶(5mC)→5-羟甲基胞嘧啶(5hmC)→5-甲酰胞嘧啶(5fC)→5-羧基胞嘧啶(5caC)
氧化生成的5caC空间结构发生改变,完全抵抗后续APOBEC3A脱氨作用,最终测序时仍识别为C;未被修饰的普通胞嘧啶无氧化修饰,会被脱氨转为U,PCR后读为T,实现甲基化位点区分。
反应体系需新鲜现配Fe(II)溶液启动氧化,缓冲液配套粉剂需提前离心至管底,重组缓冲液-20℃仅可保存4个月,氧化步骤可4℃过夜或-20℃冷冻暂停实验。
特异性保护5hmC,TET2氧化产生的内源5hmC,可被T4-BGT催化糖基化,结合葡萄糖基团生成5gmC(5-葡萄糖基羟甲基胞嘧啶);5gmC同样不受APOBEC3A脱氨,实现5mC、5hmC同时完整保留检测,解决传统BS-seq无法区分两种修饰的短板。
无核酸外切酶、切口酶残留,不会随机切割模板DNA,不破坏文库片段完整性,适配10–500 ng gDNA、cfDNA、FFPE多种降解样本。
EM-seq第二步转化核心酶,单链DNA特异性脱氨酶,锌离子依赖催化:
单链DNA中无甲基化修饰的胞嘧啶(C)脱氨基转化为尿嘧啶U
对TET2生成的5caC、T4-BGT生成的5gmC无催化活性
U与A配对,测序识别为T;甲基化修饰位点仍为C,最终数据格式与WGBS完全一致,可直接复用Bismark、bwa-meth等成熟分析流程,无需重构生信脚本。
操作注意点
DNA需经甲酰胺(推荐)或新鲜0.1 M NaOH变性为单链后,才能被A3A高效识别;脱氨后磁珠纯化不可过度干燥,否则DNA难洗脱、得率大幅下降。
除转化三步核心酶,完整EM-seq建库流程还需NGS常规分子酶,翌圣配套完整国产化试剂:
包含T4 DNA Polymerase、T4 Polynucleotide Kinase、Taq DNA Polymerase,作用是补齐DNA打断后的粘性末端、3’端加A尾,保证接头稳定连接(翌圣货号12901ES、12902ES、13486ES)
连接EM-seq甲基化修饰专用接头,接头胞嘧啶预先甲基化保护,避免被A3A脱氨(翌圣货号12996等)
耐受模板中大量U碱基,无扩增偏倚,完成文库PCR扩增(翌圣单酶货号10145ES,预混液货号12928ES)
甲基化专用片段化酶(Hieff UltraShear,12218ES),酶法打断不破坏甲基化修饰标记,替代超声Covaris打断。
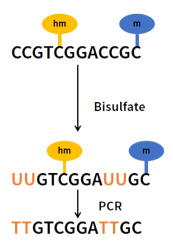
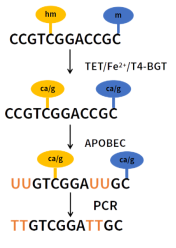
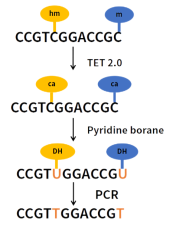
图1. BS转化示意图(左)、EM-seq酶法转化示意图(中)与Taps转化示意图(右)
TAPS(TET-assisted Pyridine Borane Sequencing)与EM-seq转化逻辑完全相反:甲基化5mC最终转为T,未甲基化C保持不变,文库碱基复杂度更高、测序数据利用率显著提升,可同步检测甲基化与基因组SNV、CNV变异,适合液体活检多组学联合分析。
与EM-seq TET2功能相似,将5mC、5hmC全部氧化为5caC,但下游无T4-BGT糖基化步骤,直接进入还原反应
TET1氧化活性适配吡啶硼烷还原体系,反应条件更温和,室温即可完成氧化,更适配自动化96孔高通量建库平台。
TAPS体系不依赖胞嘧啶脱氨酶,是与EM-seq最关键区别:
1) TET1氧化生成的5caC,经吡啶硼烷还原为DHU(二氢尿嘧啶);
2) 普通DNA聚合酶无法识别DHU,需配套专用兼容扩增酶;3)PCR第一轮延伸将DHU替换为T,最终测序中甲基化位点读T,未甲基化C保持C,碱基平衡、无严重AT/CG偏倚,测序Q30更高,比对速度提升3–5倍。
普通高保真酶难以延伸含DHU模板,翌圣eTAPS试剂盒搭配双酶体系:
1. DHU特异性延伸酶:第一轮长延伸(30 min),将DHU高效转换为T;
2. 常规高保真U耐受聚合酶:后续指数扩增,降低PCR扩增偏倚,适配低拷贝cfDNA微量文库(翌圣单酶货号10145ES,预混液货号12928ES)。
补充:DM-seq对比(拓展酶法体系)
行业另一小众酶法DM-seq使用CxMTase羧甲基转移酶,先对未甲基化C、5hmC进行修饰保护,再用APOBEC3A仅脱氨5mC;该技术应用范围窄,仅用于特定位点甲基化精细验证,暂未大规模商业化。
|
技术 |
核心转化逻辑 |
关键酶 / 试剂 |
碱基转换规则 |
|
BS seq 重亚硫酸盐 |
强酸强碱化学脱氨,无酶参与 |
亚硫酸氢钠(化学试剂) |
未甲基 C→T;5mC/5hmC 保留 C,无法区分 5mC 与 5hmC |
|
EM seq 酶转化 |
酶促保护修饰 C,脱氨未修饰 C |
TET2+T4 BGT+APOBEC3A |
未甲基 C→T;5mC/5hmC 均保留 C,可区分两种修饰 |
|
TAPS (eTAPS) 酶转化 |
酶氧化修饰 C,化学还原转化为 DHU |
TET1 + 吡啶硼烷 + DHU 兼容 PCR 酶 |
5mC/5hmC→T;未甲基 C 保留 C,同步检测甲基化 + SNV |
✅优势:试剂盒成本最低、技术成熟、数据库与生信流程完善、DNA输入范围极宽(0.1–2000 ng);
❌缺陷:剧烈酸碱高温导致DNA降解90%以上,cfDNA、FFPE建库失败率高;高GC区域严重覆盖缺失;无法区分5mC/5hmC;文库碱基失衡,测序数据浪费严重;
适用场景:细胞系、新鲜组织等足量高质量完整DNA,预算有限、仅基础全基因组甲基化图谱研究。
✅优势:全程温和酶促,DNA片段完整度高、文库插入片段更长;GC覆盖均匀,CpG岛捕获率提升;微量样本(10 ng起)稳定建库;可同时定量5mC与5hmC;数据兼容WGBS分析软件,学习成本低;重复性高;
❌缺陷:试剂成本约为BS-seq 4倍;转化总时长6–8 h,操作步骤多、2轮磁珠纯化;仍存在C→T碱基失衡问题;
适用场景:cfDNA液体活检、FFPE肿瘤组织、微量穿刺样本、胚胎微量细胞、需要同时检测5hmC的发育表观研究,是临床转化首选酶法。
✅优势:仅甲基化位点发生碱基转换,文库碱基复杂度高,测序效率大幅提升;可同步分析甲基化与基因组突变、拷贝数变异;DNA损伤程度最低,兼容单分子长读长三代测序;无APOBEC脱氨步骤,减少操作纯化;
❌缺陷:商业化时间短,生信流程普及度低于BS/EM-seq;配套专用扩增酶成本高;无法直接复用传统BS分析流程;
适用场景:肿瘤早筛多组学联合分析、单细胞甲基化、超高深度甲基化测序、需要同步挖掘突变与甲基化标记的临床队列研究。
|
指标 |
BS-seq |
EM-seq |
TAPS(eTAPS) |
|
最低 DNA 起始量 |
0.1 ng |
10 ng |
10 ng |
|
DNA 损伤程度 |
极高(大量断裂丢失) |
低(酶促温和) |
极低 |
|
转化总时长 |
0.5–2.5 h |
6–8 h |
4–6 h |
|
是否区分 5mC/5hmC |
否 |
是 |
是 |
|
GC 覆盖偏倚 |
严重 |
轻微 |
几乎无 |
|
能否同步检测 SNV |
否 |
否 |
是 |
|
数据分析兼容性 |
全流程成熟 |
兼容 BS 所有软件 |
需专用比对流程 |
|
单反应成本 |
低 |
高 |
较高 |
|
应用 |
货号 |
名称 |
|
片段化酶 |
Hieff® MethyShear 甲基化片段化酶 |
|
|
甲基化转化试剂 |
Hieff® Mag Superfast DNA Methylation Bisulfite Kit 超快速DNA亚硫酸氢盐转化试剂盒(磁珠法) |
|
|
DNA Enzymatic methyl-Conversion Kit DNA酶法甲基化转化试剂盒 |
||
|
Recombinant Ten-Eleven Translocase2.0 (eTET2.0, with buffer) |
||
|
甲基化单链建库试剂盒 |
Hieff NGS® Methyl-seq ssDNA Library Prep Kit for Illumina® V2 单链甲基化建库试剂盒 |
|
|
Hieff NGS® Methyl-seq ssDNA Library Prep Kit for MGI® 单链DNA甲基化建库试剂盒 |
||
|
双链建库试剂盒 |
Hieff NGS® dsDNA Methyl Library Prep Kit for Illumina® 双链甲基化建库试剂盒(WGBS、RRBS适用) |
|
|
相关单酶产品 |
Hieff Canace® Uracil+ High-Fidelity DNA polymerase mix/ 耐U扩增酶(甲基化适用扩增酶) |
|
|
Hieff Canace® Uracil+ High-Fidelity DNA Polymerase (1 U/μL) |
||
|
Recombinant Ten-Eleven Translocase 2.0 TET甲基胞嘧啶双加氧酶2.0 (TET 2.0) |
||
|
Recombinant APOBEC3A (A3A) Protein |
||
|
CpG-Specific Carboxymethyltransferase (CxMTase, 30 μM) |
||
|
T4 Phage β-glucosyltransferase (T4-BGT) T4 β-葡糖基转移酶 (10 U/μL) |
||
|
T4 DNA Polymerase T4 DNA聚合酶 (5 U/μL) |
||
|
T4 polynucleotide Kinase T4多聚核苷酸激酶 (10 U/μL) |
||
|
13486ES |
Hieff NGS® S-Taq DNA Polymerase for dA-Tailing |
|
|
E.coli DNA Ligase E.coli DNA连接酶 (60 U/µL) |
||
|
FuniCut® HpaII |
||
|
FuniCut® MspI |
||
|
FuniCut® DpnI |